论文带读第26期 · Takahashi & Yamanaka 2006 · Cell 126(4):663-676 · DOI 10.1016/j.cell.2006.07.024
一个我在读论文前就有的疑问
你有没有想过一个问题:为什么伤口愈合后长出来的是疤痕,而不是全新的皮肤?
一块皮肤受伤了,身体只能打个补丁,不能重新长出一模一样的组织。一个干细胞分化成皮肤细胞之后,它就永远是皮肤细胞了,不能变回去。细胞分化就像一条单行道——只能往前开,不能掉头。
这是我在读这篇论文之前,对细胞命运最根深蒂固的认识。
2006年,日本京都大学的一个团队在《细胞》杂志上发表了一篇论文,只有14页。它证明了一件事:细胞的命运不是单行线。普通皮肤细胞只需要四个基因开关,就能倒退回胚胎状态。
今年正好是这篇论文发表二十周年。六年之后,它拿了诺贝尔奖。
今天我来拆这篇论文,看它到底做了什么,怎么做的,以及对你意味着什么。
原来的路为什么走不通
在2006年之前,科学家已经知道一种能变成全身任何细胞的"母细胞"存在——胚胎干细胞。这种细胞有两个了不起的本事:它能无限增殖,同时保持变成任何细胞的潜力。
问题是,取这种母细胞必须破坏胚胎。这涉及伦理争议,来源也非常有限。如果病人需要用自己的细胞治病,还得面对排斥问题——别人的细胞进了你的身体,免疫系统会攻击它。
不用胚胎,用病人自己的普通细胞,能不能造出母细胞?
这个问题困扰了整个领域很多年。已有的证据指向两条路:一条是把成年细胞的核塞进卵细胞里(克隆),另一条是让成年细胞和胚胎干细胞融合。两条路都证明了一件事——细胞里存在某种可以被"重置"的机制。但没有人知道,到底是哪些因子在驱动这个重置。
这篇论文的切入口就在这里。
不是加法,是减法
研究者的思路非常朴素。
既然胚胎干细胞里有些基因特别活跃,维持着母细胞的特性,那反过来想:把这些基因塞进普通细胞里,能不能让它变回母细胞?
他们先挑了24个候选基因。这24个基因要么在胚胎干细胞里高表达,要么被已有的研究认为和干细胞特性有关。
然后他们做了一件我觉得非常漂亮的事:不是加法,是减法。
先把24个基因全部装进普通的小鼠胚胎成纤维细胞(你可以理解为皮肤里的结构细胞),看能不能让它变成母细胞。结果:可以。22个克隆存活下来,其中一些长得和胚胎干细胞一模一样——圆的、大核仁、细胞质很少。
接下来,逐个去掉基因,看去掉哪个之后,细胞就活不了了。
就像一个24人的团队,一个一个送走,看谁走后项目就垮掉——那个人就是关键。
这个实验的美感在于,它不是问"加什么能行",而是问"少了谁不行"。
经过一轮一轮淘汰,答案出来了:只需要四个因子——Oct3/4、Sox2、Klf4、c-Myc。
只用其中三个,细胞也能活,但长得不像母细胞,也变不成其他细胞。少一个都不行。这四个名字你只需要记一次,后面我统称"这四个开关"。
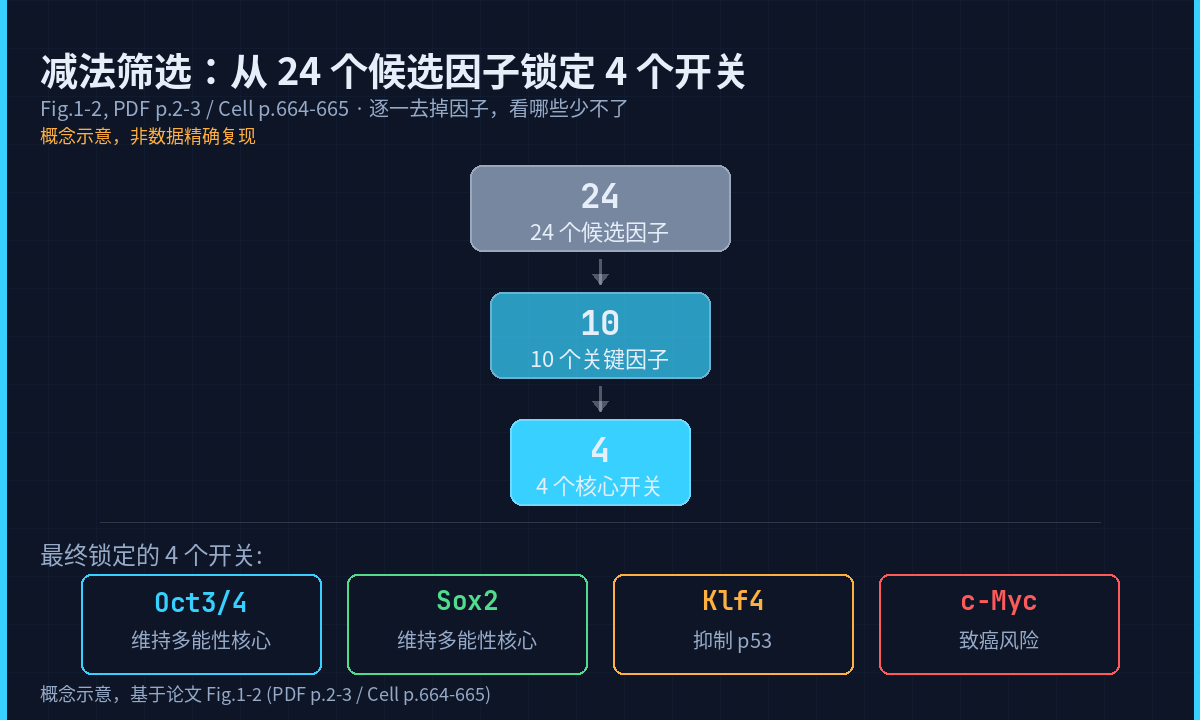
我的读法是:这四个开关不是随便挑出来的。Oct3/4和Sox2是胚胎干细胞里维持"万能"状态的核心转录因子,这在2006年之前就已经知道了。意外的是两个"帮手"——Klf4和c-Myc,它们本来是和肿瘤相关的基因。一个致癌基因居然参与了细胞重编程,这在当时是出乎意料的。
硬证据:倒回去的细胞真的能变成任何细胞
光说"长得像"不够。怎么证明这些倒回去的细胞,真的恢复了"能变成全身各种细胞"的本事?
研究者做了一个非常直接的实验:把这些细胞注射到小鼠皮肤下面。
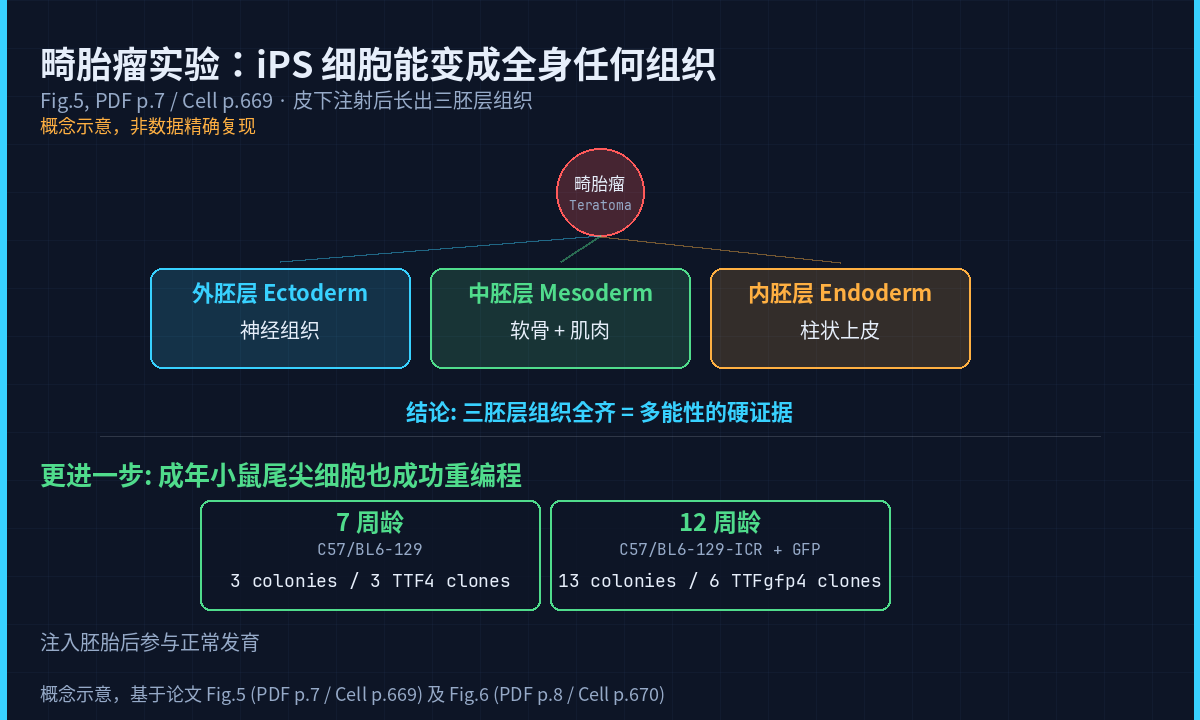
结果长出了一种特殊的肿瘤——畸胎瘤。
想象一下:一团肉里长出了神经组织、软骨、肌肉——这些本来八竿子打不着的组织,来自一管皮肤细胞。切开一看,外胚层(神经)、中胚层(软骨和肌肉)、内胚层(柱状上皮)全齐了。
这种肿瘤不是研究的目的,而是验证手段。它证明了一件事:倒回去的细胞,真的恢复了"能变成任何细胞"的本事。
更有意思的是,他们用的不光是胚胎细胞。
研究者从成年小鼠尾巴尖上取了皮肤里的普通细胞。不是胚胎,不是幼崽,是7周和12周大的完全成年的老鼠。加上同样的四个开关后,这些成年细胞也成功倒回去了。注入小鼠胚胎后,这些细胞参与了正常的胚胎发育,分化出了各个胚层的组织。
大人的细胞也能倒回去。这是这篇论文最让我震撼的发现之一。
论文中还报告了一个嵌合体实验的结果:一只E7.5胚胎中,22只里有3只检测到了绿色荧光蛋白标记的iPS细胞贡献。另一只E13.5胚胎的18只中,有2只确认了iPS细胞参与。这些数字看起来比例不高,但意义很大——它证明倒回去的细胞不只是在培养皿里活着,它能参与真正的发育过程。
不过,嵌合体出生后,27只幼崽中没有一只被确认为嵌合体小鼠。论文对此的解释很坦诚:Oct3/4在iPS细胞中的沉默并不完全,这可能是导致无法获得活体嵌合体的原因。这种诚实交代在当时的研究中是少见的。
诚实的交代:像,但不完全一样
接下来我要讲的部分,是我认为这篇论文最值得尊重的地方。
研究者没有宣称倒回去的细胞和真正的胚胎干细胞"一模一样"。他们做了全基因组的表达谱对比(DNA微阵列分析),结果是:
两者相似,但不完全相同。
具体来说,有些基因在胚胎干细胞里开得很高,在倒回去的细胞里却开得比较低。论文把这些基因分成了三组:第一组是两者都高表达的(比如Myb、Kit、Gdf3、Zic3),第二组是在胚胎干细胞和高质量iPS细胞中高表达但在低质量iPS中低表达的(包括Nanog、Sox2等),第三组是只在胚胎干细胞中高表达的(包括Dnmt3a、Dnmt3b等)。
这个区分很重要。它告诉我们:重编程不是简单的"一键恢复出厂设置",而是一个不完全的、有层次的过程。有些基因开关被成功重置了,有些还没有。
另一件事是病毒载体的问题。用来运送这四个开关的逆转录病毒,会在细胞的基因组里留下大约20个拷贝(论文的Southern blot分析显示每个克隆有约20个整合位点)。这意味着细胞的DNA被外来的基因片段"占了位"。对研究来说可以接受,但对临床应用来说是个隐患。
另外还有一个容易被忽略的细节:这些iPS细胞在没有饲养层细胞的情况下无法保持未分化状态,即使有LIF也不行。这意味着它们对培养环境的依赖比胚胎干细胞更强。论文把这也列为iPS细胞和胚胎干细胞的一个区别。
这些细节决定了这项技术的边界在哪——哪里已经走通,哪里还有隐患。
致癌风险:一个绕不开的坎
四个开关里有一个叫c-Myc。它本身就是个致癌基因——在正常身体里,c-Myc的正常工作是推动细胞生长和分裂。活得太旺就是癌症。
论文里写得很明确:“Use of c-Myc may not be suitable for clinical applications”(c-Myc可能不适合临床应用)。
这个警告不是空穴来风。论文自身就报告了:有些注射了iPS细胞的小鼠长出了肿瘤。畸胎瘤实验中,5个iPS-MEF10克隆、3个iPS-MEF4克隆、1个iPS-MEF4wt克隆和6个iPS-MEF3克隆被注射到裸鼠体内——其中iPS-MEF3克隆长出的肿瘤全部由未分化细胞组成,完全没有分化迹象。
论文对致癌机制的分析也值得一看。c-Myc蛋白会与组蛋白乙酰转移酶(HAT)复合物结合,包括TRRAP、CBP和p300。在哺乳动物基因组中,c-Myc的结合位点可能多达25000个——远多于Oct3/4和Sox2的结合位点数量。c-Myc可能通过全局性的组蛋白乙酰化,让Oct3/4和Sox2得以结合到它们的特异性靶点上。这是一个很精巧的机制假说,但也意味着c-Myc的影响范围太大了——它不只是打开你需要的开关,它在到处点火。
论文还讨论了一个有趣的平衡关系:Klf4能直接抑制p53(一个肿瘤抑制因子),而c-Myc能抑制p21(一个细胞周期抑制因子)。这两个因子在重编程过程中可能形成了某种互相制约的平衡——但这种平衡一旦在体内被打破,后果可能就是肿瘤。
后来的研究团队换掉了c-Myc,或者改用更安全的方式运送基因(比如用仙台病毒或质粒代替逆转录病毒)。但那些改进是后来的团队做的,不是这篇论文的内容——别把后来的成果算在这篇头上。
这就是这篇论文的全貌:有突破,也有风险。两者都被写在了同一篇论文里。
从论文到诺奖:六年意味着什么
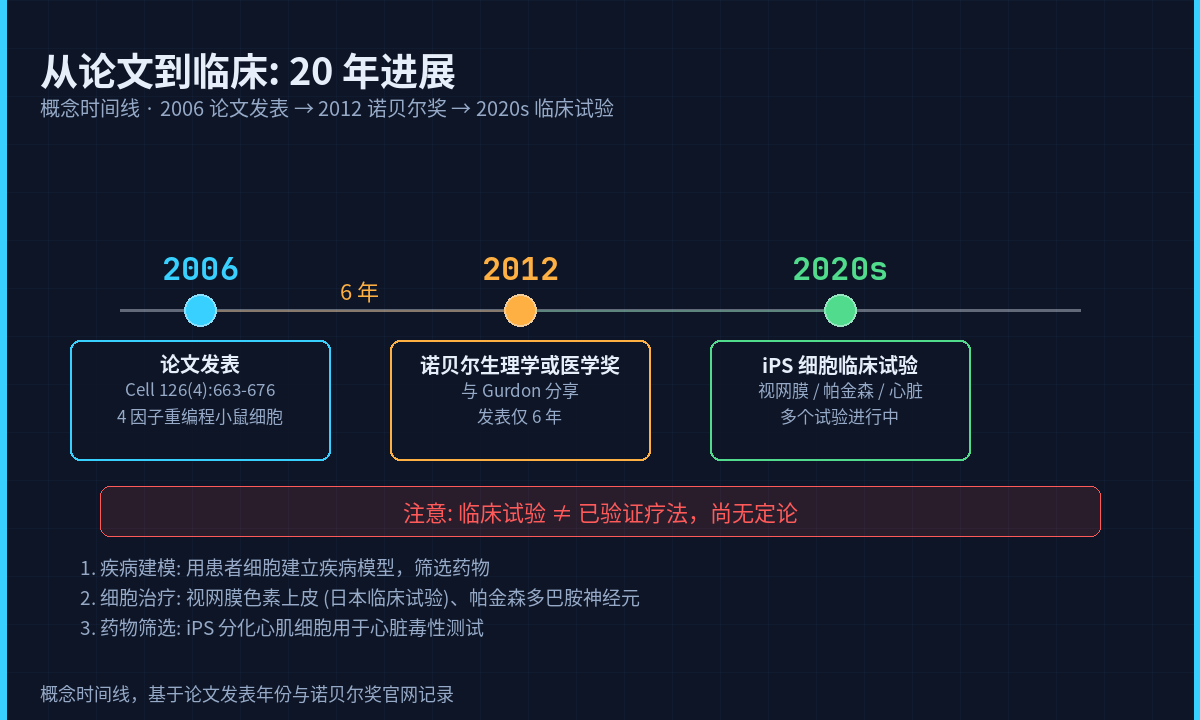
这篇论文2006年发表,2012年拿了诺贝尔生理学或医学奖。
六年。
在学术界,这个速度几乎等于所有人立刻看懂了它有多重要。诺贝尔奖通常要等二三十年,等一个发现的影响被充分验证。六年就给,说明评委认为这件事的意义不需要再等了。
今天,科学家用这类倒回去的细胞做很多事。用它建立帕金森病的模型来筛选药物,用它培养视网膜细胞来治疗黄斑变性。日本已经开展了用这类细胞治疗眼病的临床试验。全球还有多个试验在进行中。
注意我的措辞:正在进行。我不会说它能治什么病、能抗什么衰老。那些都还在试验阶段,没有结论可以说。
你可能见过的"干细胞针"
说到这里,你可能在市面上见过一种说法:“干细胞抗衰老针”。动辄几万块一针,号称能让人变年轻,能逆龄。
这里面需要辨析一下。
科学基础是扎实的。这篇论文就是证据之一,多项临床试验也在进行中。从2006年到现在,这个领域发展得非常快,新的临床试验一个接一个地启动。
但市面上某些宣称,是把"还在研究阶段的技术"包装成了"已经验证的抗衰老方案"。这是两回事。研究中有希望,不等于已经证明有效。
我不能对任何品牌或疗法给出医疗建议。你要做的,是分清哪些是扎实的科学,哪些是包装过的营销。
值得提醒的几个点
读完这篇论文,有几个地方我想特别说一下。
第一,重编程效率极低。论文自己承认,只有很小一部分表达了四个因子的细胞变成了iPS细胞。他们提出了几种可能的解释:四个因子的表达水平需要精确落在某个范围内(论文引用了一个数据:Oct3/4蛋白水平升高或降低50%就会导致胚胎干细胞分化);可能需要额外的染色体改变;也可能是逆转录病毒的随机插入在某些克隆中恰好激活了正确的基因组合。至今,效率问题仍然是这个领域的一个核心挑战。
第二,iPS细胞的来源问题没有定论。论文讨论了一种可能性:iPS细胞可能不是由成纤维细胞直接重编程而来,而是由培养物中本来就存在的少量组织干细胞转化而来(已知约0.067%的皮肤细胞是干细胞)。但他们做了反驳:从骨髓基质(应该含有更多间充质干细胞)中诱导iPS的效率同样很低,而且三因子诱导的细胞完全没有多能性。这些证据不支持"组织干细胞是iPS来源"的假说,但也没有给出确定答案。
第三,四个因子之间存在微妙的相互制约。c-Myc促进增殖,Klf4抑制p53但也激活p21(一个细胞周期抑制因子),而c-Myc又会抑制p21。论文认为"the balance between c-Myc and Klf4 may be important for the generation of iPS cells"——这四个开关不是各自独立工作的,它们之间有复杂的相互作用。这个认识对后来改进重编程方案很有启发。
第四,论文最后提到了一个方向:他们发现用Nanog基因的报告系统可以替代Fbx15进行筛选。这意味着他们当时已经有了改进筛选方法的思路——用更严格的筛选标准,可能得到质量更高的iPS细胞。后来的研究确实沿着这个方向走得很远。
只记住三件事
还记得开头那个问题吗?伤口为什么只能长疤,不能重新长出完整的皮肤?
因为细胞分化是单行道——至少在2006年之前我们是这么认为的。
这篇14页的论文证明了:四个开关,就能让普通皮肤细胞恢复出厂设置。这不是比喻,是实验事实。
第一,细胞命运不是单行线。四个基因开关就能让成熟细胞倒退回胚胎状态。
第二,这不是科幻。基于iPS细胞的临床试验正在进行中,虽然还不是成熟疗法,但方向已经明确。
第三,不是所有"干细胞"都一样。市面宣传和科学事实之间,有一条清晰的线。
我们是那种会把论文读到底的人。如果你也想知道这四个开关后来怎么走进了医院,点个关注,下期继续。
参考文献
Takahashi, K. & Yamanaka, S. (2006). Induction of Pluripotent Stem Cells from Mouse Embryonic and Adult Fibroblast Cultures by Defined Factors. Cell, 126(4), 663-676. DOI: 10.1016/j.cell.2006.07.024